
Динамика пороговой возбудимости мышц и нервов при их утомлении
Факторы ослабления мышечных сокращений при утомлении. По мере приближения скелетной мышцы к состоянию выраженного утомления высота ее сокращений закономерно уменьшается. Однако сократительная ответная реакция может вновь временно повышаться при усилении электрического раздражения. Несмотря на то что описанные физиологические явления хорошо известны в нейромышечной физиологии, полноценного и исчерпывающего объяснения вызывающих их причин до сих пор не предложено. Снижение амплитуды мышечных сокращений обусловливается комплексом взаимосвязанных физиологических факторов:
· 1-й фактор: Постепенное расходование энергетических субстратов и веществ, служащих основным источником энергии для мышечного сокращения.
· 2-й фактор: Аккумуляция метаболических продуктов распада в ткани утомленной мышцы.
· 3-й фактор: Электрическая поляризация нерва в точке его повторного раздражения.
· 4-й фактор: Прогрессирующее понижение пороговой возбудимости нервно-мышечных структур.
Между указанными патофизиологическими факторами существует функциональное взаимодействие. В частности, накопившиеся продукты метаболического распада (второй фактор) способны непосредственно вызывать или усугублять понижение возбудимости ткани (четвертый фактор).
Пороговое раздражение как количественный показатель возбудимости. Действие утомления на возбудимость нервно-мышечного препарата или изолированной мышцы может быть количественно исследовано путем определения колебаний минимальной силы раздражителя. Под этой величиной понимается наименьшая сила электрического тока, способная вызвать едва заметное мышечное сокращение — так называемый порог раздражения. По мере падения физиологической возбудимости порог раздражения закономерно повышается, в силу чего высота порога служит надежной объективной мерой возбудимости ткани.
Изучение влияния утомления на возбудимость нервно-мышечного аппарата, а также характера восстановления функций после отдыха представляет фундаментальный интерес для физиологии движения. Отдельным важным аспектом является исследование влияния эндогенных гуморальных факторов, таких как адреналин и секреция надпочечников, на возбудимость утомленного органа. Данные физиологические вопросы послужили предметом систематических экспериментальных исследований, выполненных Грубером (Gruber) в 1913 году.
Методология экспериментального определения порога раздражения. Нервно-мышечные препараты, использованные в настоящих экспериментах, по своему устройству во многих отношениях были аналогичны препаратам, описанным в работах Найса (Nice) и автора. С целью исключения системного угнетающего воздействия наркоза некоторые лабораторные животные подвергались децеребрации под кратковременным эфирным наркозом. После этого они использовались в опытах аналогично препаратам, полученным в условиях уретанового наркоза.
В ходе хирургического препарирования обнажался и затем пересекался общий малоберцовый нерв (peroneus communis), иннервирующий переднюю большеберцовую мышцу (tibialis anticus). Вблизи перерезанного конца нерва прикладывались платиновые электроды, предназначенные для воспроизведения утомления мышцы. Для измерения пороговой возбудимости и электрического сопротивления ткани между утомляющими электродами и мышцей кратковременно прикладывалась вторая пара платиновых электродов.
Вторая пара электродов вводилась строго по мере необходимости и помещалась каждый раз в одну и ту же фиксированную точку. В ходе эксперимента предпринимались обязательные меры по удалению избыточной влаги с поверхности нервного ствола и концов платиновых электродов. Для непосредственного определения порога раздражения мышцы кожа и прилегающие поверхностные ткани отделялись от tibialis anticus в двух точках, расположенных на расстоянии около 5 см друг от друга.
Через образованные отверстия в толщу мышечной ткани вводились заостренные концы платиновых электродов. Для предотвращения явления местной поляризации (local polarization) концы электродов при каждом последующем измерении вводились в новые участки обнаженной мышечной ткани. К сухожилию передней большеберцовой мышцы привязывалась прочная нить, переброшенная через блок и соединенная с рычажком, который при подъеме растягивал пружину. При измерении порога пружина отсоединялась от рычажка, благодаря чему мышца растягивалась исключительно собственной силой рычажка, составлявшей около 15 г.
Схема подключения электродов и расчет β-единиц. Для точной оценки силы электрического тока, используемого при измерении порога, применялся метод Мартина (Martin) из Гарвардской лаборатории. Данный метод позволяет вычислять силу индуцированного электрического раздражения в условных единицах. При включении в расчеты сопротивления тканей эти величины обозначаются как β-единицы (бета-единицы).
При измерении порога нервно-мышечного препарата прибор подключался к нерву через вторую пару электродов, расположенных на расстоянии более 3 см от утомляющих электродов, при этом катод находился ближе к мышце. При прямом измерении порога мышцы аппарат подключался через вводимые в ткань острые платиновые электроды. Положение вторичной обмотки индукционной катушки регулировалось путем ее постепенного отодвигания от первичной обмотки до наступления минимального мышечного сокращения. В схеме применялись четыре установки сопротивления: одна соответствовала собственному сопротивлению ткани, а три содержали добавочные сопротивления в 10 000, 20 000 и 30 000 Ом.
В проведенных опытах использовалось только раздражение при размыкании электрической цепи. Сразу после фиксации положения вторичной обмотки и до отсоединения электродов выполнялись три последовательных измерения сопротивления тканей, на основе которых вычислялись четыре итоговых значения β. Сила тока в первичной обмотке при измерении порога нервно-мышечного препарата составляла обычно 0,01 А, однако в отдельных случаях доводилась до 0,05 А. Для нормальной мышцы применялся ток 0,05 А, а для деиннервированной ткани — 1,0 А. Вторичная обмотка использованной индукционной катушки обладала собственным сопротивлением 1400 Ом, которое суммировалось со средним сопротивлением тканей; при расчетах также учитывались поправки на намагничивание сердечника катушки.
Закономерности понижения возбудимости при утомлении. Порог раздражения для общего малоберцового нерва (peroneus communis) у децеребрированных животных варьировал в диапазоне от 0,319 до 2,96 единиц, при этом среднее значение по 16 опытам составило 1,179 β-единиц. Аналогичную среднюю величину ранее получил Портер (Porter) для лучевого нерва «спинномозговой» кошки. У животных, находившихся под уретановым наркозом, средний порог оказался существенно выше и колебался от 0,644 до 7,05 (среднее значение по 10 опытам — 3,081 β-единиц).
Сравнительный анализ утомления в условиях анестезии. Порог раздражения передней большеберцовой мышцы (tibialis anticus) у децеребрированных животных находился в пределах от 6,75 до 33,07 единиц, составляя в среднем 18,8 единиц по 15 опытам. При уретановом наркозе показатели порога мышцы варьировали от 12,53 до 54,9 единиц со средним значением 29,84 β-единиц (по 10 опытам). Полученные данные свидетельствуют о том, что анестезия в заметной мере влияет на исходную величину порога возбудимости.
В исследованиях, проведенных в физиологической лаборатории Гарвардского университета, Портер продемонстрировал, что порог покоящегося нервно-мышечного препарата сохраняет постоянство на протяжении многих часов, что впоследствии подтвердил Грубер (см. рис. 19). Следовательно, если после нагрузки в пороге наступают изменения, они представляют собой неизбежный результат процессов утомления в нервно-мышечном препарате или мышце.
В результате утомления порог нервно-мышечного препарата у 16 децеребрированных животных возрос со среднего значения 1,179 до 3,34 β-единиц, то есть на 183%. У 10 животных под уретановым наркозом пороговый уровень поднялся со средней величины 3,08 до 9,048 β-единиц, что соответствует приросту на 208%. Сопоставимый рост порога раздражения зарегистрирован и при прямом раздражении нормальной мышцы: у децеребрированных животных нормальный порог 18,8 единиц при утомлении увеличился до 69,54 единиц (на 274%), а в условиях уретанового наркоза — с 29,849 до 66,238 β-единиц (на 122%).
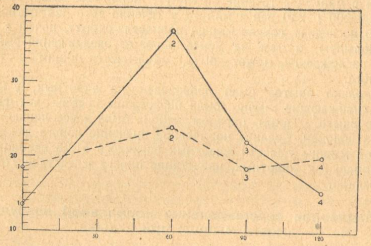
Рис. 18. Кривые, полученные из данных одного опыта. На абсциссе отложены промежутки времени в минутах, на ординате — значения порога в единицах. Сплошная линия есть запись мышцы, пунктирная — нервно-мышечного препарата. Значения для нервно-мышечного препарата увеличены в десять раз, для мышцы же взяты нормальные значения.
· 1 — нормальные значения порога;
· 2 — пороги после утомления, наступившего в результате поднятия 120 и 240 раз в минуту;
· 3 и 4 — порог после отдыха.
Совпадение обеих записей значений порога раздражения (как показано на рис. 18) — одной, полученной для нерва, снабжающего мышцу, и другой, непосредственно для самой мышцы, — служило проверкой исправности электродов. В данном контрольном опыте порог для мышцы после утомления в пункте 2 на 167% выше, чем в норме (в пункте 1), тогда как порог нервно-мышечного препарата после утомления выше нормального на 30,5%.
Выявлена прямая зависимость между продолжительностью выполняемой работы и ростом порогового раздражения: к концу второго часа непрерывной нагрузки порог утомленной мышцы оказывался выше, чем через час после утомления. Однако отношение между объемом произведенной работы и величиной порога не столь однозначно. У некоторых животных после поднятия груза 120 г со частотой 120 раз в минуту в течение 30 минут порог был выше, чем после поднятия груза 200 г со частотой 240 раз в минуту за тот же период времени, хотя во втором случае мышца произвела работу почти в четыре раза большую. Данное расхождение, возможно, объясняется общим состоянием организма животного.
Особенности реакции денервированной мышцы. Отдельная серия экспериментов была проведена на животных, у которых нервы, снабжающие мышцы, были перерезаны за 7–14 дней до опыта. Таким образом, мышца была полностью лишена живых нервных волокон (денервация). Среднее нормальное значение порога раздражения для денервированной мышцы у 6 животных равнялось 61,28 β-единицам, при этом нарастание порога вследствие утомления также достигало чрезвычайно высоких показателей.
Сведения об авторах и источниках:
Авторы: Вальтер Кеннон
Источник: Физиология эмоций. Телесные изменения при боли, голоде, страхе и ярости
Данная публикация будет полезна физиологам и психологам, а также широкому кругу образованных читателей, владеющих элементарными основами физиологии и интересующихся вопросами влияния эмоций и физиологических реакций на организм.
Дата добавления: 2026-09-27; просмотров: 2;
Генерация страницы за: 0.014 сек.